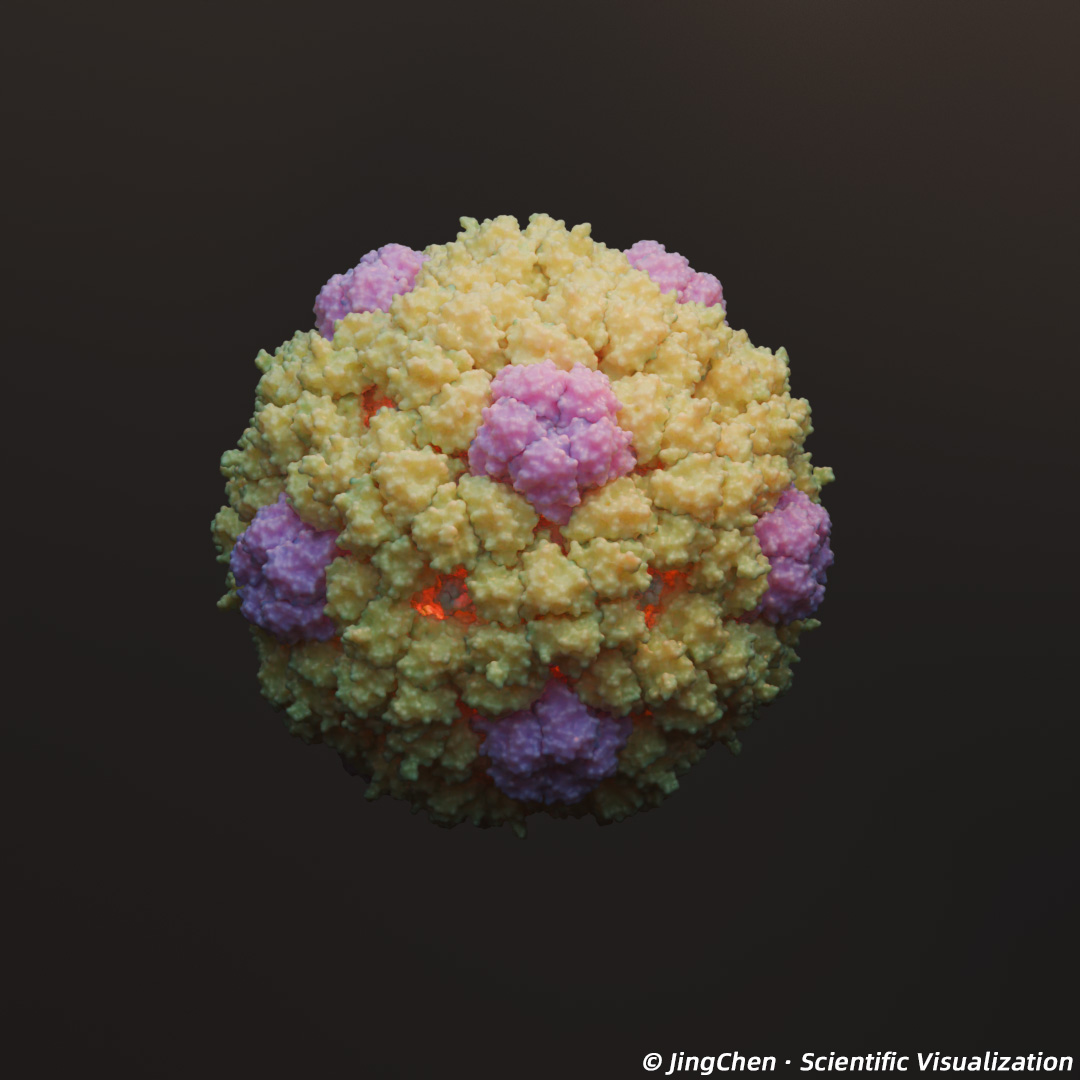
Three Receptors, One Architecture
Conserved architecture, divergent regulation, distinct Ca²⁺ signaling
如果只看整体结构,IP₃R1、IP₃R2 和 IP₃R3 很难被认为是三种“完全不同”的分子机器。
它们都属于 IP₃ receptor 家族,都是位于内质网膜上的四聚体 Ca²⁺ release channel,并共享高度保守的整体 architecture。
但真正有意思的问题恰恰是:
如果结构如此相似,为什么三个亚型的调控行为并不完全相同?
这也是这次可视化项目想回答的问题。
From a conserved scaffold to divergent regulation
本次项目选择了六个代表性 cryo-EM structures:
IP₃R1
8EAQ — high-Ca²⁺ state
8EAR — Ca²⁺/IP₃/ATP-bound state
IP₃R2
12AD — apo state
12AI — IP₃/Ca²⁺/ATP-bound state
IP₃R3
6UQK — self-binding peptide-bound state
7T3Q — IP₃/ATP-bound pre-active B state
这些结构并不是简单的“关闭 → 打开”序列,而是从不同角度展示三个亚型的 regulatory landscape。
8EAQ 和 8EAR 来自 IP₃R1 的结构研究,分别对应高 Ca²⁺状态和 Ca²⁺/IP₃/ATP 条件下的受体构象。
IP₃R2 的 12AD 和 12AI 则提供了 apo 与 ligand-bound 两种状态。后者以 3.64 Å 分辨率解析,并明确包含 IP₃、Ca²⁺ 和 ATP。
IP₃R3 则呈现出更特殊的调控逻辑。6UQK 解析了一个位于受体内部的 self-binding peptide,该 peptide 可以占据 IP₃-binding region 并发挥 antagonist 作用。 随后的结构研究进一步解析了 IP₃R3 的多个 pre-active states,其中 7T3Q 被定义为 IP₃/ATP-bound pre-active B state,而不是 active state。
The same binding pocket does not mean the same receptor
三个 IP₃R 亚型最值得注意的差异之一,来自 IP₃ recognition。
IP₃-binding core 在家族中高度保守,因此从静态结构上看,很难仅凭 ligand-contact residues 解释三个亚型的不同敏感性。
2026 年 IP₃R2 的结构研究提出,一个重要答案可能来自邻近调控结构的构象动力学。
其中尤其值得关注的是 ARM2。
在 IP₃R2 中,ARM2 可以在不同构象之间转换,并与相邻亚基以及自身 ligand-binding domain 建立不同的 contacts,从而影响 IP₃-binding cleft 的 accessibility。作者因此提出,ARM2 更像一个 dynamic hinge / dynamic door,而不是简单的静态阻塞物。
因此,isoform-specific regulation 不一定意味着:
“三个 pocket 长得完全不同。”
它也可能意味着:
“三个相似的 pocket 被不同的动态环境控制。”
ATP adds another regulatory layer
IP₃R 的 activation 也并不是只有 IP₃ 一个输入。
在 IP₃R2 中,ATP-binding pocket 位于 ILD–LNK interface,靠近 ARM3 的 Ca²⁺ sensing machinery,并形成连接 cytoplasmic regulatory domains 与 transmembrane pore 的 allosteric hub。
这意味着:
ligand recognition
并不是孤立发生的。
它必须经过:
LBD → ARM domains → ILD/LNK/ARM3 → TM domain
最终将构象变化传递到 pore。
这也是为什么我在这组可视化中没有把 IP₃R 处理成简单的“ligand + channel”关系,而是把它理解为一个具有层级化调控网络的 molecular machine。
The pore does not simply “open”
IP₃R3 的结构研究和后续 IP₃R 家族研究进一步说明,通道 gating 也不能简单理解成一个大型 iris-like pore opening。
在 IP₃R 家族中,activation 与局部 transmembrane rearrangements、side-chain movement 以及 pore environment 的改变密切相关。
换句话说:
真正重要的可能不是“蛋白张开了多少”,而是局部 energetic barrier 如何被重新塑造。
这使 IP₃R 的 activation 更像一个连续的 allosteric process,而不是一个简单的 binary switch。
From structural conservation to functional diversity
因此,这组六个结构最终想表达的并不是:
Three similar proteins.
而是:
One conserved molecular architecture, tuned in different ways.
IP₃R1、IP₃R2 和 IP₃R3 保留了共同的 structural framework,但它们在 ligand recognition、regulatory domains、inter-subunit interactions 以及 gating machinery 周围形成了不同的调控特征。
从整体结构到局部 interface,
从 ligand-binding pocket 到 transmembrane pore,
真正塑造功能差异的,往往不是一次巨大的结构重构,
而是那些尺度很小、却位于关键位置的变化。
这也是这次项目最想表达的:
Conserved architecture.
Divergent regulation.
Distinct Ca²⁺ signaling.
Structures used
IP₃R1 — 8EAQ, 8EAR
IP₃R2 — 12AD, 12AI
IP₃R3 — 6UQK, 7T3Q
PDB / EMDB data were used as the structural basis for visualization. 8EAQ corresponds to EMD-27982;6UQK corresponds to EMD-20849。


